
مبانی مولکولی و سلولی تنظیم فیزیولوژیک (فصل اول کتاب فیزیولوژی دامپزشکی کانینگهام)
???? نقشه راه و نکات کلیدی این بخش (Key Points)
- تمامی تغییرات فیزیولوژیک در بدن حیوانات توسط یک خانواده از درشتمولکولها یعنی پروتئینها میانجیگری میشوند.
- عملکرد هر پروتئین به شکل فضایی سهبعدی (Conformation) و توانایی آن در تغییر شکل (Allostery) وابسته است.
- مجموعهای از واکنشهای آنزیمی، اسید آمینه تیروزین را به مولکولهای پیامرسان دوپامین، نوراپینفرین و اپینفرین تبدیل میکند.
- انقباض عضله، آغاز و توقف آن به اختصاصیت اتصالی و ویژگیهای آلوستریک پروتئینها وابسته است.
- غشاهای بیولوژیک ساختاری موزائیکی از پروتئینها هستند که درون یک دولایه فسفولیپیدی شناورند.
مقدمه: فیزیولوژی از دریچه آناتومی مولکولی عملکردی
فیزیولوژی، علم مطالعه تنظیم تغییرات در درون موجودات زنده—و در مورد بحث ما، پستانداران و حیوانات عالی—است. درک ما از فیزیولوژی در ۳۵ سال گذشته در نتیجه شناخت عمیقتر از مبانی مولکولی تنظیم زیستی، دستخوش تحولی شگرف شده است. اغلب اصولی که در این فصل بررسی میکنیم، در مورد تمامی سلولهای حیوانی صدق میکنند.
رویکرد اتخاذشده در اینجا، رویکرد «آناتومی مولکولی عملکردی» (Functional Molecular Anatomy) است؛ به این معنا که ساختار مولکولی سلول را با تأکید ویژه بر عملکرد فیزیولوژیکِ آن مولکولها و ساختارهای فوقمولکولی در بدن یک حیوان زنده و سالم بررسی میکنیم.
۱. تمام تغییرات فیزیولوژیک توسط پروتئینها میانجیگری میشوند
تمامی تغییرات فیزیولوژیک بدن حیوان توسط یک دسته واحد از درشتمولکولهای پلیمری (مولکولهای بزرگ) به نام پروتئینها هدایت میشوند. عملکرد پروتئینها را میتوان به ۵ دستهی اصلی تقسیم کرد که در جدول زیر به صورت کاربردی دستهبندی شدهاند:
| عملکرد پروتئین | مکانیسم عمل مولکولی | مثال کاربردی در بدن حیوان |
|---|---|---|
| ۱. کاتالیز (Catalysis) | افزایش چشمگیر سرعت واکنشهای شیمیایی بدون تغییر دادن نقطه تعادل واکنش، توسط کاتالیزورهای پروتئینی یعنی آنزیمها (Enzymes). | تبدیل آنزیمی تیروزین به دوپامین، نوراپینفرین و اپینفرین. |
| ۲. جفتشدن واکنشها (Reaction Coupling) | اتصال یک واکنش خودبهخودی و انرژیزا («سرازیری / Downhill») به یک واکنش غیرخودبهخودی و انرژیخواه («سربالایی / Uphill») همراه با انتقال انرژی. | هیدرولیز ATP توسط میوزین برای ایجاد انقباض عضلانی و پمپاژ خون. |
| ۳. انتقال (Transport) | ایجاد مسیرهای اختصاصی برای عبور یونها و مولکولهای قطبی از سد روغنی دولایه لیپیدی غشا. | پمپ سدیم-پتاسیم (Na⁺/K⁺-ATPase) و کانالهای یونی نورونها. |
| ۴. ساختار (Structure) | تشکیل رشتههای اسکلت سلولی و اتصال سلولها به یکدیگر و به ماتریکس خارجسلولی برای حفظ فرم بافت و اندام. | شبکههای رشتهای اکتین (F-actin) و اتصالات بینسلولی. |
| ۵. پیامرسانی (Signaling) | ایجاد تغییر شکل کنترلشده برای انتقال و تبدیل اطلاعات («هر تفاوتی که تفاوت ایجاد میکند»). | گیرندههای غشایی هورمونها و کانالهای یونی حساس به ولتاژ. |
نکته بسیار مهم این است که یک مولکول پروتئینی واحد میتواند همزمان چند عملکرد را با هم ترکیب کند (مثلاً هم آنزیم باشد، هم ناقل و هم پیامرسان). علاوه بر پروتئینهایی که منحصراً برای حمل اطلاعات تخصص یافتهاند، تغییر در فعالیت آنزیمی یا تغییر در انتقال یونها نیز میتواند «تفاوت ایجاد کند» و به عنوان یک پیام در درون سلول عمل نماید.
???? بیا سادهش کنیم: «جفتشدن واکنشها» یعنی چه؟
فرض کنید میخواهید یک تنه درخت بزرگ را اره کنید یا یک ماشین سنگین را از سربالایی بالا ببرید؛ این کارها خودبهخودی انجام نمیشوند و انرژی میخواهند (واکنش سربالایی / Uphill). در موتور ماشین، سوختن بنزین انرژی آزاد میکند (واکنش سرازیری / Downhill) و پیستونهای موتور این دو را به هم وصل میکنند تا ماشین حرکت کند. در سلولهای بدن حیوان، پروتئینها نقش همان موتور را دارند: آنها شکستن مولکول انرژیزای ATP (سرازیری) را به کارهایی مثل منقبض کردن عضله یا پمپ کردن یونها (سربالایی) وصل میکنند!
۲. عملکرد پروتئین به شکل فضایی (Conformation) و تغییرات آلوستریک وابسته است
عملکرد هر پروتئین بر پایه دو ویژگی مولکولی بنیادی بنا شده است:
- اختصاصیت اتصالی (Binding Specificity): پروتئینها میتوانند با دقت بسیار بالا به مولکولهای خاصی متصل شوند. شیارها یا فرورفتگیهای سطح پروتئین که جایگاه اتصال (Binding site) نام دارند، تنها با مولکولی که شکلی مکمل آنها دارد—یعنی لیگاند (Ligand)—جفت میشوند؛ دقیقاً مانند رابطه «قفل و کلید» (Lock-and-Key). کوچکترین تغییر در شکل سوراخ قفل (پروتئین) یا کلید (لیگاند)، رفتار پروتئین را به کلی تغییر میدهد. برخلاف قفلهای معمولی، پروتئینها اغلب چندین جایگاه اتصال برای لیگاندهای متعدد دارند.
- تغییر شکل یا آلوستری (Allostery): شکل سهبعدی پروتئین (Conformation) توسط برهمکنشهای آبگریز (جمع شدن اسیدهای آمینه چربیدوست در هسته مرکزی پروتئین به دور از آب و قرار گرفتن اسیدهای آمینه آبدوست در سطح بیرونی) و پیوندهای هیدروژنی میان اسیدهای آمینه قطبی پایدار میشود. از آنجا که لیگاند نیز با همین پیوندهای ضعیف در جایگاه خود نگه داشته میشود، اتصال لیگاند شکل پروتئین را تغییر میدهد و تغییر شکل پروتئین نیز میل ترکیبی آن به سایر لیگاندها را عوض میکند. به این توانایی تغییر شکل، آلوستری (Allostery — واژهای یونانی به معنای «شکل دیگر») میگویند.
چهار مکانیسم اصلی ایجاد تغییر شکل آلوستریک در پروتئینها
- ۱. اتصال لیگاند (Ligand Binding): اتصال یک لیگاند به جایگاه تنظیمی (مثلاً جایگاه B) شکل پروتئین را طوری عوض میکند که جایگاه A دیگر قادر به پذیرش لیگاند خود نباشد (یا برعکس). این روش مستلزم هیچگونه تغییری در ساختار کووالانسی پروتئین نیست.
- ۲. فسفریلاسیون (Phosphorylation): اتصال کووالانسی یک گروه فسفات (حاصل از هیدرولیز ATP و دارای بار منفی قوی) به گروه هیدروکسیل (-OH) ریشههای اسید آمینه سرین، ترئونین یا تیروزین در پروتئین. بار منفی قوی فسفات، پیوندهای هیدروژنی و برهمکنشهای الکترواستاتیک پروتئین را تغییر داده و آن را فعال یا غیرفعال میکند.
- ۳. تغییر میدان الکتریکی / ولتاژ (Voltage Change): برخی پروتئینهای مهم (بهویژه کانالهای یونی دریچهدار ولتاژی) در پاسخ به تغییر اختلاف پتانسیل الکتریکی اطراف غشا، موقعیت اسیدهای آمینه باردار خود را تغییر داده و دریچه کانال را باز یا بسته میکنند.
- ۴. نیروهای مکانیکی (Mechanical Forces): تغییر شکل کنترلشده پروتئین در پاسخ به فشار یا کشش فیزیکی؛ بهترین نمونه شناختهشده آن، پروتئینهای سلولهای مویی گوش داخلی هستند که در پاسخ به امواج صوتی تغییر شکل داده و جریان یون را تغییر میدهند.
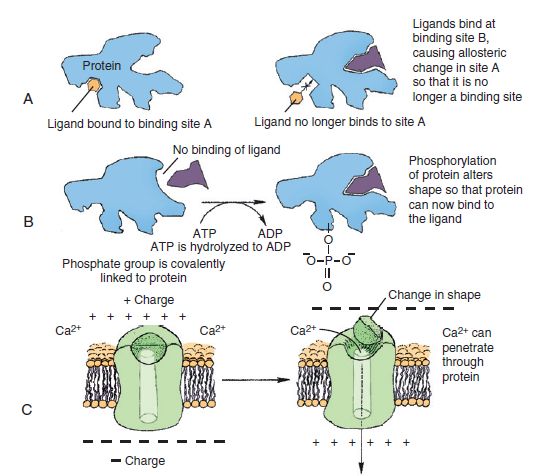 ????️ تصویر ۱.۱ کتاب کانینگهام (Fig. 1.1) ( نمایش سه مکانیسم تغییر شکل آلوستریک: اتصال لیگاند، فسفریلاسیون و کانال کلسیمی حساس به ولتاژ )
تصویر ۱.۱: سه مکانیسم رایج تغییر شکل آلوستریک در پروتئینها. (A) اتصال لیگاند: اتصال لیگاند به جایگاه آلوستریک (B) شکل جایگاه (A) را تغییر داده و مانع اتصال لیگاند قبلی میشود. (B) فسفریلاسیون: افزودن گروه فسفات (حاصل از هیدرولیز ATP) به سرین، ترئونین یا تیروزین، پروتئین غیرفعال را به فرم فعال تغییر شکل میدهد. (C) پروتئینهای وابسته به ولتاژ: دپولاریزاسیون غشا میدان الکتریکی اطراف کانال Ca²⁺ را تغییر داده و دریچه آن را برای ورود کلسیم باز میکند.
۳. مثال اول آلوستری: تبدیل آنزیمی تیروزین به دوپامین، نوراپینفرین و اپینفرین
اسید آمینه تیروزین (Tyrosine) طی یک مسیر ۴ مرحلهای دقیق به سه مولکول پیامرسان کلیدی تبدیل میشود: (۱) دوپامین (انتقالدهنده عصبی مغز)، (۲) نوراپینفرین (انتقالدهنده عصبی مغز و سیستم عصبی خودمختار محیطی)، و (۳) اپینفرین (انتقالدهنده عصبی خودمختار و هورمون بخش مرکزی فوقکلیه). از آنجا که هر سه مولکول دارای یک حلقه بنزنی با دو گروه هیدروکسیل (حلقه کاتکول) و یک گروه آمین هستند، به آنها کاتکولآمینها (Catecholamines) میگویند.
| مرحله | ماده اولیه | آنزیم کاتالیزور | تغییر شیمیایی و محصول نهایی |
|---|---|---|---|
| گام ۱ | تیروزین (Tyrosine) | تیروزین هیدروکسیلاز مرحله محدودکننده سرعت | افزودن یک گروه هیدروکسیل (-OH) به حلقه فنیل و تولید دوپا (DOPA). شکل DOPA تغییر کرده و دیگر در قفل آنزیم اول جا نمیگیرد، پس رها میشود. |
| گام ۲ | دوپا (DOPA) | ال-آروماتیک آمینواسید دکربوکسیلاز | برداشتن گروه کربوکسیل (-COOH) و تبدیل DOPA به دوپامین (Dopamine). |
| گام ۳ | دوپامین (Dopamine) | دوپامین هیدروکسیلاز | افزودن یک گروه هیدروکسیل به دم دوکربنه دوپامین و تولید نوراپینفرین (Norepinephrine). |
| گام ۴ | نوراپینفرین (Norepinephrine) | فنیلاتانولآمین N-متیلترانسفراز | افزودن یک گروه متیل (-CH₃) به نیتروژن آمینی و تولید اپینفرین / آدرنالین (Epinephrine). |
تنظیم آلوستریک این مسیر: فسفریلاسیون آنزیم تیروزین هیدروکسیلاز (نخستین و کندترین آنزیم مسیر) سرعت تبدیل تیروزین به DOPA و در نتیجه سرعت کل سنتز کاتکولآمینها را افزایش میدهد. در مقابل، هنگامی که غلظت محصولات نهایی (دوپامین، نوراپینفرین و اپینفرین) در سلول به حد کافی برسد، خود این مولکولها به جایگاهی متفاوت از جایگاه تیروزین بر روی آنزیم تیروزین هیدروکسیلاز متصل شده و آن را مهار میکنند؛ به این پدیده کلاسیک، مهار توسط محصول نهایی (End-product Inhibition) میگویند.
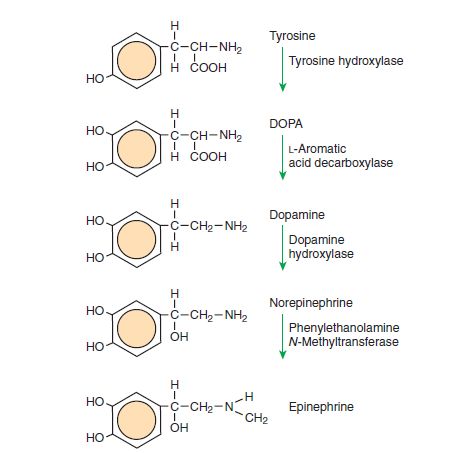 ????️ تصویر ۱.۲ کتاب کانینگهام (Fig. 1.2) ( نمودار ساختار مولکولی و مراحل آنزیمی بیوسنتز اپینفرین از اسید آمینه تیروزین )
تصویر ۱.۲: مسیر بیوسنتز اپینفرین. اسید آمینه تیروزین طی چهار واکنش آنزیمی متوالی به دوپا، دوپامین، نوراپینفرین و اپینفرین متابولیزه میشود. توجه کنید که با وجود شباهت ساختاری این مولکولها، هر مرحله نیازمند آنزیم کاملاً اختصاصی خود است (مثلاً اپینفرین به دوپامین هیدروکسیلاز متصل نمیشود).
???? بیا سادهش کنیم: «مهار توسط محصول نهایی» چطور کار میکند؟
خط تولید یک کارخانه را تصور کنید که در آن کارگر اول (آنزیم تیروزین هیدروکسیلاز) ماده خام را برش میزند و به کارگرهای بعدی میدهد تا محصول نهایی (آدرنالین) ساخته شود. اگر انبار کارخانه از آدرنالین پر شود، خودِ این محصولات به سراغ کارگر اول میروند، روی صندلی استراحت او مینشینند و دستهایش را میبندند تا تولید متوقف شود و مواد خام هدر نرود! به محض اینکه آدرنالین مصرف شد و انبار خالی شد، کارگر اول دوباره آزاد شده و خط تولید را روشن میکند.
۴. مثال دوم آلوستری: انقباض عضلانی و تنظیم آن در عضلات مخطط
در مهرهداران سه نوع بافت عضلانی وجود دارد: (۱) عضله اسکلتی (مسئول حرکت حیوان)، (۲) عضله قلبی (منحصراً در قلب اما از نظر ساختاری مشابه عضله اسکلتی)، و (۳) عضله صاف (در دیواره اندامهای توخالی مثل عروق خونی، روده و رحم). هر سه نوع عضله با منقبض شدن و کوتاه کردن طول خود نیروی کششی تولید میکنند و اساس همگی آنها برهمکنش و تغییرات آلوستریک دو پروتئین اکتین (Actin) و میوزین (Myosin) است.
معماری فیلامانهای ضخیم (میوزین) و نازک (اکتین)
- میوزین (Myosin): پروتئین بزرگی (وزن مولکولی ۵۰۰,۰۰۰) که شبیه یک چوب گلف دوسر است. دمهای کشیده مولکولهای میوزین به هم میچسبند و تجمعات دوقطبی به نام فیلامانهای ضخیم (Thick filaments) را میسازند. سرهای میوزین دارای جایگاه اتصال اختصاصی برای ATP و اکتین هستند.
- اکتین (Actin): زیرواحدهای کروی اکتین به نام G-actin (وزن مولکولی ۴۵,۰۰۰) به یکدیگر زنجیر شده و رشتههای بلند و باریکی به نام فیلامانهای نازک (Thin filaments) در عضله و F-actin (میکروفیلامان) در سایر سلولها را میسازند. در تمام سلولهای حیوانی، شبکهها و دستههای F-actin مانند طنابهای یک چادر، شکل سلول را حفظ کرده و امکان مهاجرت سلولی را فراهم میکنند.
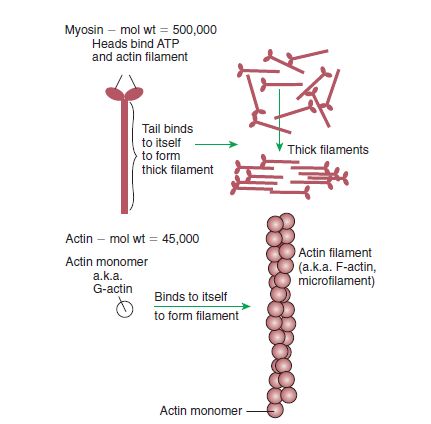 ????️ تصویر ۱.۳ کتاب کانینگهام (Fig. 1.3) ( تجمع دمهای میوزین برای ساخت فیلامان ضخیم و پلیمریزه شدن G-actin به F-actin )
تصویر ۱.۳: نحوه سازمانیابی میوزین و اکتین برای تشکیل ساختارهای رشتهای. دمهای میوزین به یکدیگر متصل شده و فیلامان ضخیم را میسازند، در حالی که مونومرهای کروی G-actin به هم زنجیر شده و فیلامان نازک (F-actin) را تشکیل میدهند که در عضلات مخطط با تروپونین و تروپومیوزین همراه است.
چرخه ضربه قدرت (Power Stroke) در موتور اکتومیوزین
- گام A (حالت رها): مولکول ATP به سر میوزین متصل است؛ در این شکل فضایی، میوزین میل ترکیبی بسیار ناچیزی به اکتین دارد.
- گام B (آمادهباش و اتصال): فعالیت آنزیمی سر میوزین (ATPase) مولکول ATP را به ADP و فسفات معدنی (Pᵢ) هیدرولیز جزئی میکند، اما هر دو همچنان به سر میوزین متصل میمانند. این وضعیت شکل سر میوزین را طوری تغییر میدهد که با قدرت به فیلامان اکتین مجاور میچسبد (تشکیل پل عرضی / Cross-bridging).
- گام C (ضربه قدرت / Power Stroke): با تشکیل پل عرضی، ADP و Pᵢ از سر میوزین جدا میشوند. رها شدن آنها یک تغییر آلوستریک قدرتمند ایجاد کرده و سر میوزین خم میشود (Flexes)؛ در نتیجه فیلامان اکتین روی فیلامان ضخیم میلغزد و عضله کوتاه میشود (مکانیسم لغزش فیلامانها).
- گام D (جدا شدن و تکرار چرخه): اتصال یک مولکول ATP جدید به سر میوزین، شکل آن را به حالت اولیه بازمیگرداند (Unflexes)، اتصالش با اکتین قطع میشود و چرخه دوباره آغاز میگردد.
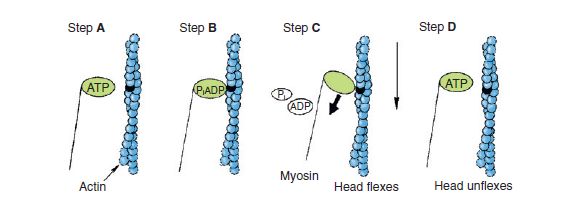 ????️ تصویر ۱.۴ کتاب کانینگهام (Fig. 1.4) ( نمودار چهارمرحلهای چرخه ضربه قدرت اکتومیوزین: Steps A, B, C, D )
تصویر ۱.۴: چرخه ضربه قدرت اکتومیوزین. (A) میوزین متصل به ATP فاقد تمایل به اکتین است. (B) هیدرولیز جزئی ATP به ADP و Pᵢ باعث چسبیدن سر میوزین به اکتین میشود. (C) رها شدن ADP و Pᵢ باعث خم شدن سر میوزین و لغزش فیلامان نازک میگردد. (D) اتصال ATP جدید پل عرضی را آزاد میکند.
جفتشدن تحریک-انقباض (Excitation-Contraction Coupling) در عضلات مخطط
در عضلات اسکلتی و قلبی (و نه عضله صاف)، روشن و خاموش شدن موتور اکتومیوزین توسط دو پروتئین تنظیمی بر روی فیلامان نازک یعنی تروپونین (Troponin) و تروپومیوزین (Tropomyosin) کنترل میشود:
- در غیاب یون کلسیم (Ca²⁺ پایین): رشته بلند تروپومیوزین در بخش بالایی شیار اکتین قرار گرفته و جایگاههای اتصال میوزین روی اکتین را مسدود میکند؛ بنابراین عضله در حالت استراحت است.
- هنگام تحریک الکتریکی و افزایش Ca²⁺ داخلسلولی: یونهای Ca²⁺ به تروپونین متصل میشوند. اتصال کلسیم یک تغییر آلوستریک در تروپونین ایجاد کرده و تروپونین نیز موقعیت تروپومیوزین را تغییر میدهد؛ به طوری که تروپومیوزین به عمق شیار اکتین فرو میرود، جایگاههای اتصال میوزین آزاد میشوند و انقباض آغاز میگردد. با بازگشت سطح Ca²⁺ به حالت پایه، تروپومیوزین دوباره بالا آمده و مسیر میوزین را میبندد.
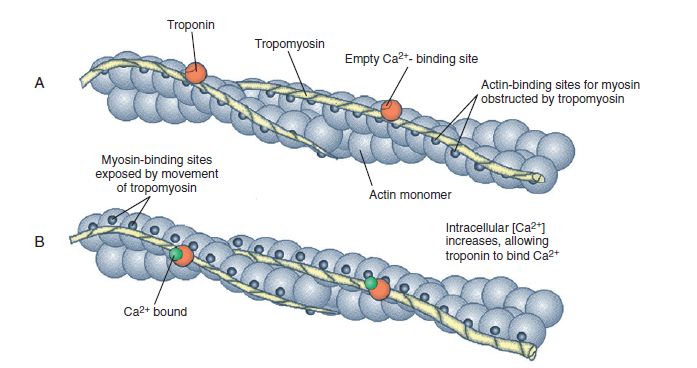 ????️ تصویر ۱.۵ کتاب کانینگهام (Fig. 1.5) ( موقعیت تروپونین و تروپومیوزین روی رشته اکتین در غیاب و حضور یون کلسیم )
تصویر ۱.۵: تنظیم انقباض عضله مخطط توسط یون Ca²⁺. (A) در غلظت پایین کلسیم، تروپومیوزین جایگاههای اتصال میوزین روی اکتین را مسدود کرده است. (B) با افزایش غلظت کلسیم داخلسلولی و اتصال آن به تروپونین، تروپومیوزین به عمق شیار اکتین حرکت کرده و جایگاههای اتصال را برای سر میوزین آشکار میسازد.
۵. غشاهای بیولوژیک؛ موزائیکی از پروتئینها در دولایه فسفولیپیدی
پیش از بررسی مکانیسمهای انتقال مواد در سلول، باید با ساختار بنیادی غشاهای زیستی آشنا شویم. فسفولیپیدها مولکولهایی هستند که دارای دو دم بلندِ آبگریز از جنس اسید چرب و یک سرِ قطبیِ آبدوست حاوی گروه فسفات باردار میباشند. در محیط آبی بدن، این مولکولها به صورت خودبهخودی ساختاری شبیه به پرده حباب صابون تشکیل میدهند که از دو ردیف (دولایه / Bilayer) فسفولیپید ساخته شده است: سرهای آبدوست به سمت بیرون (برای ایجاد پیوند هیدروژنی با آب) و دمهای روغنی اسید چرب به سمت داخل (رو به یکدیگر و به دور از آب) جهتگیری کردهاند.
پروتئینهایی که درون این دولایه لیپیدی جای گرفتهاند (پروتئینهای غشایی درونی / Intrinsic membrane proteins)، ساختار مدل موزائیک سیال (Fluid Mosaic Model) را میسازند. به تعبیر زیبای اس. جی. سینگر (S. J. Singer، یکی از بنیانگذاران این مدل)، پروتئینهای غشایی همانند «کوههای یخی هستند که در دریایی از فسفولیپید شناورند» و میتوانند در صفحه غشا جابهجا شوند.
چهار عملکرد کلیدی غشاهای بیولوژیک در سلول
- بخشبندی یا کمپارتمانسازی (Compartmentation): جداسازی نواحی مختلف بر اساس ترکیب و عملکرد. برای مثال، غشای اندامک لیزوزوم آنزیمهای گوارشی (هیدرولیتیک) خطرناک را در خود محصور نگه میدارد تا کل سیتوپلاسم سلول را هضم نکنند.
- انتقال انتخابی (Selective Transport): تنظیم دقیق ورود و خروج مواد عمدتاً توسط پروتئینهای ناقل تخصصی. برای مثال، کانال یونی مسئول پیامرسانی عصبی، ۱۵ برابر بیشتر به یون سدیم (Na⁺) نفوذپذیر است تا به یون پتاسیم (K⁺).
- پردازش و انتقال اطلاعات (Information Processing): وجود گیرندههای غشایی بر سطح خارجی سلول برای دریافت پیامهای محیطی (هورمونها و انتقالدهندههای عصبی)، درست همانند اندامهای حسی (چشم و گوش) در سطح بدن حیوان.
- سازماندهی فضایی واکنشهای بیوشیمیایی: احتمال برخورد تصادفی پروتئینها در سطح دوبعدی غشا بسیار بیشتر از فضای سهبعدی سیتوپلاسم است *(به قول نویسنده کتاب: اگر کشتی تایتانیک میتوانست شیرجه بزند یا پرواز کند، راههای بیشتری برای فرار از کوه یخ داشت!)*. علاوه بر این، سلولهای اپیتلیال کلیه میتوانند پروتئینهای خود را در نواحی مجزا حصارکشی کنند تا تعادل آب و نمک بدن را تنظیم نمایند.
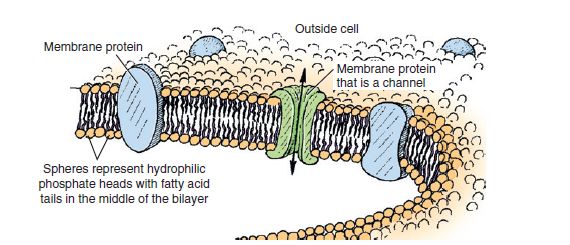 ????️ تصویر ۱.۶ کتاب کانینگهام (Fig. 1.6) ( مدل موزائیک سیال غشاهای زیستی: سرهای فسفات آبدوست، دمهای اسید چرب و پروتئینهای کانال )
تصویر ۱.۶: مدل موزائیک سیال برای غشاهای بیولوژیک. غشاهای زیستی از یک دولایه لیپیدی (سرهای فسفات کروی آبدوست در بیرون و دمهای اسید چرب آبگریز در مرکز) تشکیل شدهاند که پروتئینهای غشایی و کانالهای یونی درون آن شناورند.
۶. قوانین فیزیکی انتقال غشایی، اسمز و معادله وانتهوف
چه مولکولهایی بدون کمک پروتئین از دولایه لیپیدی عبور میکنند؟
- عبور غیرممکن (سد نفوذناپذیر): ذرات باردار (تمامی یونها) و مولکولهای قطبی با وزن مولکولی بیشتر از حدود ۱۰۰ دالتون—شامل تمامی قندها (مونوساکاریدها)، اسیدهای آمینه، نوکلئوزیدها و پلیمرهای آنها (پروتئینها و اسیدهای نوکلئیک)—نمیتوانند از دولایه لیپیدی خالص عبور کنند.
- عبور آزادانه (بدون نیاز به پروتئین): مولکولهای قطبی بسیار کوچک مانند آب (H₂O) و اوره، و همچنین مولکولهای محلول در چربی (چربیدوست / Lipophilic) از جمله اکسیژن (O₂)، نیتروژن (N₂)، هورمونهای استروئیدی و متأسفانه بسیاری از سموم مصنوعی نظیر حشرهکشها (Insecticides) به راحتی از دولایه لیپیدی عبور میکنند.
پتانسیل الکتروشیمیایی، انتشار (غیرفعال)، تعادل و انتقال فعال
تمامی تغییرات در جهان در جهت کاهش انرژی پتانسیل یا انرژی آزاد (Free Energy) سیستم رخ میدهند. حرکت مولکولها تحت تأثیر برآیند سه نیرو یعنی غلظت، فشار و ولتاژ الکتریکی است که مجموع آنها را بر مبنای هر مول، پتانسیل الکتروشیمیایی (Electrochemical potential) مینامند. تفاوت این پتانسیل در دو طرف غشا، نیروی محرکه (Driving force) نام دارد:
- انتشار یا انتقال غیرفعال (Diffusion / Passive Transport): حرکت خودبهخودی مواد از ناحیه با پتانسیل الکتروشیمیایی بالا به پایین بدون مصرف انرژی.
- تعادل (Equilibrium): حالتی که در آن اختلاف پتانسیل الکتروشیمیایی در دو طرف غشا صفر است و جریان خالص متوقف میشود. به یاد داشته باشید که تعادل به معنای «توازن» (Balance) است، نه «برابری» (Equality)؛ یعنی غلظتها و ولتاژها در دو طرف غشا با هم برابر نیستند، بلکه نیروهای آنها یکدیگر را خنثی میکنند.
- انتقال فعال (Active Transport): جابهجایی مواد خلاف شیب پتانسیل الکتروشیمیایی (از پایین به بالا) با صرف انرژی، از طریق پروتئینهایی که این حرکت «سربالایی» را به هیدرولیز ATP جفت میکنند.
اسمز (Osmosis) و معادله وانتهوف (van't Hoff Equation)
اسمز حرکت آب از عرض یک غشای نیمهتراوا در پاسخ به تفاوت پتانسیل الکتروشیمیایی آب در دو طرف غشاست. هنگامی که دو محلول با غلظت نمک متفاوت (مثلاً 2 mmol/L NaCl در یک طرف و 1 mmol/L NaCl در طرف دیگر) با یک دولایه لیپیدی از هم جدا شوند، یونهای سدیم و کلر قادر به عبور نیستند؛ بنابراین آب از سمت رقیقتر (پتانسیل آب بالاتر) به سمت غلیظتر (پتانسیل آب پایینتر) حرکت میکند: «آب به دنبال ماده حلشونده میرود» (Water follows solute). با بالا رفتن ستون آب در سمت غلیظتر، فشار هیدروستاتیک افزایش مییابد تا جایی که نیروی اختلاف غلظت را دقیقاً متعادل کند.
معادله وانتهوف (van't Hoff Equation): میزان فشار هیدروستاتیک مورد نیاز برای متعادل کردن فشار اسمزی (Π بر حسب اتمسفر) را محاسبه میکند:
• ϕ (فی): ضریب اسمزی اصلاحی برای محلولهای واقعی (برای NaCl حدود 0.93 است). | • i: تعداد یونهای حاصل از تفکیک ماده (2 برای NaCl و 3 برای CaCl₂).
• R: ثابت گازها (0.082 L·atm/mol·K). | • T: دمای مطلق کلوین. | • Δc: اختلاف غلظت مولی ماده نفوذناپذیر. (عبارت ϕic همان اسمولاریته بر حسب Osm/L است).
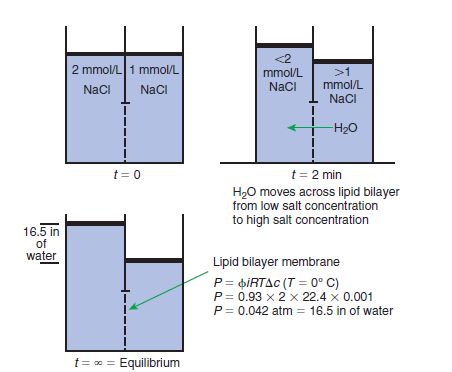 ????️ تصویر ۱.۷ کتاب کانینگهام (Fig. 1.7) ( آزمایش اسمز در دو محفظه حاوی محلول نمک ۲ و ۱ میلیمولار در زمان t=0، t=2min و تعادل )
تصویر ۱.۷: مکانیسم اسمز. در زمان صفر، دو محفظه با غلظت متفاوت نمک توسط دولایه لیپیدی جدا شدهاند. آب از سمت کمنمک (پتانسیل آب بالا) به سمت پرنمک (پتانسیل آب پایین) جریان مییابد تا زمانی که اختلاف ارتفاع ستون آب فشار هیدروستاتیکی برابر و مخالف اختلاف فشار اسمزی ایجاد کند.
۷. فرضیه استارلینگ (Starling's Hypothesis) و تعادل مایعات در مویرگها
دیواره مویرگهای خونی از یک لایه سلول اندوتلیال تشکیل شده که منافذ بین آنها اجازه عبور آب و یونها را میدهد، اما مانع خروج مولکولهای درشت به ویژه پروتئینهای پلاسما میشود. غلظت بالاتر پروتئین در خون نسبت به مایع بینابینی (ISF)، فشار اسمزی ویژهای به نام فشار اسمزی کلوئیدی یا فشار انکوتیک (Oncotic pressure) ایجاد میکند که آب را به داخل مویرگ میکشد. در مقابل، پمپاژ قلب فشار هیدروستاتیک ایجاد میکند که آب را از مویرگ به بیرون میراند.
• Pc: فشار هیدروستاتیک مویرگ (در انتهای شریانی حدود 35 mm Hg و در انتهای وریدی حدود 15 mm Hg).
• Pi: فشار هیدروستاتیک فضای بینابینی (نزدیک به 0 mm Hg).
• πc: فشار انکوتیک پلاسمای خون در مویرگ (حدود 28 mm Hg). | • πi: فشار انکوتیک مایع بینابینی (حدود 5 mm Hg).
نتیجه محاسبه: در سمت شریانی نیروی خالص برابر با +12 mm Hg (فیلتراسیون و خروج مایع به بافت) و در سمت وریدی برابر با -8 mm Hg (بازجذب مایع به داخل مویرگ) است.
???? بیا سادهش کنیم: دو علت اصلی ایجاد «ادم» (ورم بافتی) طبق قانون استارلینگ!
مویرگ را مثل یک شلنگ آبیاری سوراخدار در نظر بگیرید که داخلش اسفنجهای جذبکننده آب (پروتئین آلبومین) قرار دادهاید:
۱. کاهش آلبومین خون (بیماری مزمن کبدی در اسب و سگ): وقتی کبد خراب شود و آلبومین نسازد، اسفنجهای داخل رگ کم میشوند (πc افت میکند)؛ پس رگ نمیتواند آب را نگه دارد و آب در بافتها جمع میشود.
۲. افزایش فشار داخل رگ (نارسایی قلبی یا پریکاردیت گاو): وقتی مسیر برگشت خون به قلب مسدود شود، فشار آب داخل شلنگ (Pc) به شدت بالا میرود و آب با فشار از منافذ مویرگ به زیر پوست نشت میکند (ادم گودهگذار)!
۸. پمپ سدیم-پتاسیم (Na⁺, K⁺-ATPase) و انتقال فعال ثانویه
برای درک چگونگی عملکرد پمپها و کانالهای یونی، ابتدا باید تفاوت چشمگیر غلظت یونها در داخل و خارج سلول را در جدول مرجع کتاب کانینگهام (جدول ۱.۱) به خاطر بسپاریم:
| یون یا ماده (واحد: mmol/L) | مایع داخلسلولی (ICF) | مایع خارجسلولی (ECF) | پلاسمای خون (Blood Plasma) |
|---|---|---|---|
| سدیم (Na⁺) | 15 | 140 | 142 |
| پتاسیم (K⁺) | 150 | 5 | 4 |
| کلسیم (Ca²⁺) | 0.0001 | 1 | 2.5 |
| منیزیم (Mg²⁺) | 12 | 1.5 | 1.5 |
| کلر (Cl⁻) | 10 | 110 | 103 |
| بیکربنات (HCO₃⁻) | 10 | 30 | 27 |
| فسفات (Phosphate) | 40 | 2 | 1 |
| گلوکز (Glucose) | 1 | 5.6 | 5.6 |
| پروتئین (Protein) | 4.0 | 0.2 | 2.5 |
- پمپ سدیم-پتاسیم (Na⁺, K⁺-ATPase): این پروتئین غشایی چهارزیرواحدی (2α + 2β با جرم ۳۰۰,۰۰۰ دالتون) با هیدرولیز هر مولکول ATP، ۳ یون Na⁺ را به خارج سلول و ۲ یون K⁺ را به داخل سلول—هر دو خلاف شیب غلظتشان—پمپ میکند. از آنجا که ۳ بار مثبت خارج و ۲ بار مثبت وارد میشود، این پمپ الکتروژنیک (Electrogenic) است و مستقیماً سهم کوچکی در منفی کردن داخل سلول دارد.
- انتقال فعال ثانویه (Secondary Active Transport): شیب غلظت شدید Na⁺ که توسط پمپ سدیم-پتاسیم ساخته میشود، همانند یک باتری ذخیره عمل میکند. در سلولهای پوششی روده باریک و کلیه، ورود «سرازیری» Na⁺ به داخل سلول با جذب «سربالایی» گلوکز و اسیدهای آمینه جفت میشود.
- اصطلاحات همانتقالی: انتقال همزمان دو ماده در یک جهت سیمپورت (Symport) (مثل همانتقالدهنده سدیم/گلوکز)، انتقال در دو جهت مخالف آنتیپورت (Antiport) (مثل پمپ Na⁺/K⁺)، و انتقال تنها یک ماده یونیپورت (Uniport) نامیده میشود.
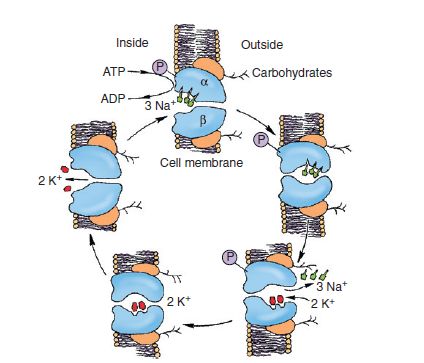 ????️ تصویر ۱.۸ کتاب کانینگهام (Fig. 1.8) ( چرخه انتقال پمپ سدیم-پتاسیم: خروج ۳ یون سدیم و ورود ۲ یون پتاسیم به ازای هر ATP )
تصویر ۱.۸: چرخه انتقال پمپ Na⁺, K⁺-ATPase. تغییر کونفورماسیون این پروتئین ناشی از فسفریلاسیون توسط ATP باعث خروج ۳ یون سدیم به خارج سلول و ورود ۲ یون پتاسیم به داخل سلول خلاف شیب غلظت میشود.
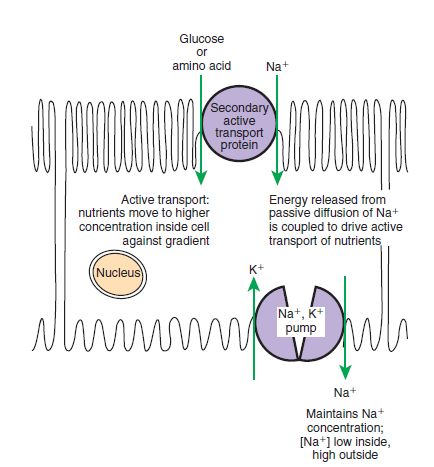 ????️ تصویر ۱.۹ کتاب کانینگهام (Fig. 1.9) ( انتقال فعال ثانویه در سلولهای اپیتلیال روده: همانتقالی گلوکز و سدیم )
تصویر ۱.۹: انتقال فعال ثانویه در جذب مواد مغذی توسط اپیتلیوم روده و کلیه. انرژی آزادشده از انتشار غیرفعال یون Na⁺ به داخل سلول (که شیب آن توسط پمپ سدیم-پتاسیم در غشای قاعدهای حفظ میشود)، برای انتقال فعال گلوکز و اسیدهای آمینه به داخل سلول به کار میرود.
۹. کانالهای یونی دریچهدار، پتانسیل استراحت غشا و معادله نرنست
انتشار تسهیلشده (Facilitated diffusion) توسط دو دسته پروتئین غشایی انجام میشود: حاملها (Carriers) که سرعت انتقال نسبتاً کندی دارند، و کانالها (Channels) که شبیه «دوناتهای پروتئینی» با منفذی در مرکز هستند و یونها یا آب (از طریق کانالهای آکواپورین / Aquaporins در کلیه) را با سرعت بسیار بالا عبور میدهند.
- کانالهای نشتی (Leak channels): کانالهایی که همیشه باز هستند و نشت مداوم یونها (بهویژه K⁺) را امکانپذیر میکنند.
- کانالهای دریچهدار لیگاندی (Ligand-gated channels): با اتصال لیگاند باز میشوند؛ مانند گیرنده نیکوتینیک استیلکولین (nAChR) در غشای عضله اسکلتی که با اتصال استیلکولین باز شده و با ورود Na⁺ انقباض عضله را آغاز میکند.
- کانالهای دریچهدار ولتاژی (Voltage-gated channels): در پاسخ به تغییر ولتاژ غشا باز میشوند و دارای یک آستانه تحریک (Threshold) هستند. بسیاری از این کانالها علاوه بر حالت «باز» (Open) و «بسته» (Closed)، حالت سومی به نام «غیرفعال» (Inactivated) دارند که در آن دریچه دوم منفذ را مسدود میکند و کانال وارد یک دوره استراحت اجباری میشود (نقص در همین دریچه غیرفعالسازی عامل بیماری HYPP در اسبهاست).
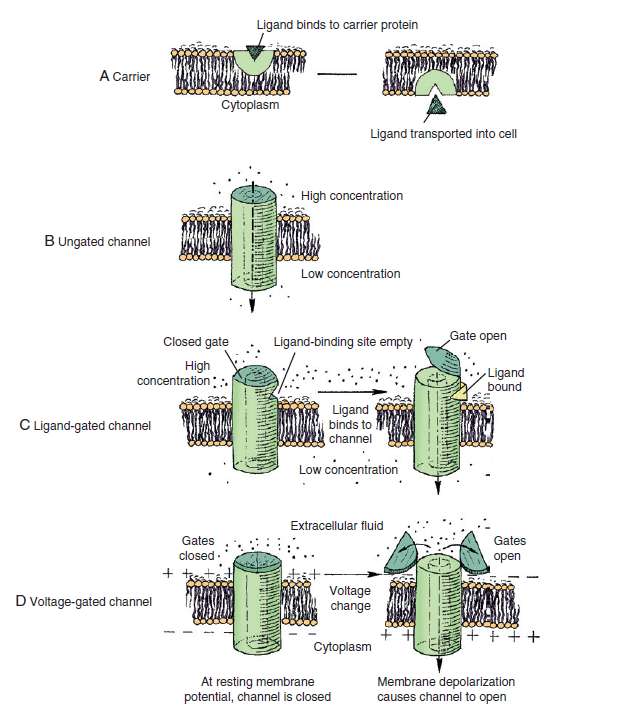 ????️ تصویر ۱.۱۰ کتاب کانینگهام (Fig. 1.10) ( انواع پروتئینهای انتشار تسهیلشده: A حامل، B کانال نشتی، C کانال لیگاندی، D کانال ولتاژی )
تصویر ۱.۱۰: انواع پروتئینهای غشایی واسطه انتشار تسهیلشده: (A) حامل (Carrier)، (B) کانال نشتی بدون دریچه (Leak channel)، (C) کانال دریچهدار لیگاندی، و (D) کانال دریچهدار ولتاژی که در اثر دپولاریزاسیون غشا باز میشود.
پتانسیل استراحت غشا و معادله نرنست (Nernst Equation)
غشای سلول همانند یک باتری دارای اختلاف ولتاژی به نام پتانسیل استراحت غشا (Resting membrane potential) است که عمدتاً ناشی از خروج غیرفعال یونهای K⁺ از طریق کانالهای نشتی پتاسیم به سمت خارج سلول است. از آنجا که پروتئینها و فسفاتهای دارای بار منفی داخل سلول نمیتوانند همراه K⁺ خارج شوند، خروج بار مثبت باعث منفی شدن فضای داخل سلول نسبت به خارج میشود تا جایی که نیروی جاذبه الکتریکی دقیقاً نیروی خروج غلظتی K⁺ را خنثی کند.
محاسبه پتانسیل تعادلی پتاسیم (EK⁺): با قرار دادن z = +1، غلظت داخلی 150 mmol و خارجی 5 mmol:
EK⁺ = −60 mV × log10(150 / 5) = −60 × 1.47 = −88.2 mV (بسیار نزدیک به پتانسیل استراحت واقعی سلول عضلانی یعنی −90 mV).
???? بیا سادهش کنیم: چرا اگر پمپ سدیم-پتاسیم با سم از کار بیفتد، سلول فوری نمیمیرد؟
پتانسیل غشای سلول مثل باتری گوشی موبایل و پمپ سدیم-پتاسیم مثل شارژر گوشی است! برای ایجاد ولتاژ منفی -90 mV در غشا، آنقدر تعداد یونهای پتاسیم جابهجاشده ناچیز است که غلظت کلی آنها تغییر نمیکند. بنابراین حتی اگر پمپ سدیم-پتاسیم را با سم مسدود کنید، انرژی ذخیرهشده در شیب غلظت (باتری) تا ساعتها ولتاژ سلول را زنده نگه میدارد؛ هرچند در نهایت برای شارژ مجدد باتری به این پمپ نیاز داریم!
انتقال از عرض سلول (Transcellular Transport) و ادغام غشایی (اگزوسیتوز و اندوسیتوز)
- انتقال اپیتلیالی در کلیه: در سلولهای لوله پیچیده نزدیک کلیه، اتصالات محکم (Tight junctions) مانند حصار عمل کرده و کانالهای نشتی Na⁺ را در سطح رأسی (Apical — رو به ادرار) و پمپهای Na⁺/K⁺-ATPase را در سطح قاعدهای-جانبی (Basolateral — رو به خون) نگه میدارند تا سدیم به طور یکطرفه از ادرار به خون بازجذب شود.
- اگزوسیتوز و اندوسیتوز و چرخه بازیافت گیرنده LDL: کلسترول خون در قالب ذرات LDL به گیرندههای سطح سلول متصل شده، در فرورفتگیهای پوششدار (Coated pits) با اندوسیتوز بلعیده میشود و اندوزوم (Endosome) میسازد. محیط اسیدی اندوزوم باعث جدا شدن گیرنده از LDL میشود؛ گیرندهها در وزیکولهایی جدا شده و با اگزوسیتوز به سطح غشا برمیگردند (هر گیرنده بیش از ۱۰۰ بار بازیافت میشود!)، در حالی که LDL به لیزوزوم رفته و هضم میشود تا کلسترول آزاد در اختیار سلول قرار گیرد.
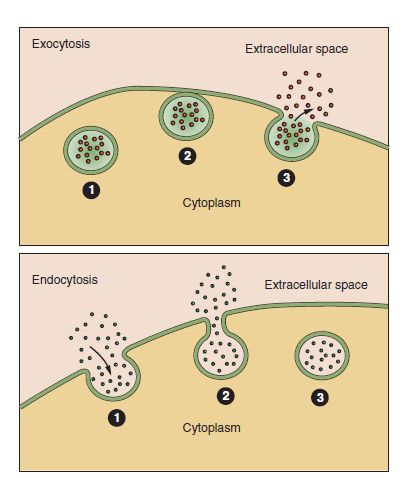 ????️ تصویر ۱.۱۱ کتاب کانینگهام (Fig. 1.11) ( فرآیندهای ادغام غشایی: اگزوسیتوز در بالا و اندوسیتوز در پایین )
تصویر ۱.۱۱: دو فرآیند ادغام غشایی (Membrane Fusion): در اگزوسیتوز (بالا) وزیکول درونسلولی با غشای پلاسمایی ادغام شده و محتویاتش را به خارج میریزد؛ در اندوسیتوز (پایین) غشای پلاسمایی مواد خارجی را احاطه کرده و به صورت وزیکول به داخل سیتوپلاسم میکشد.
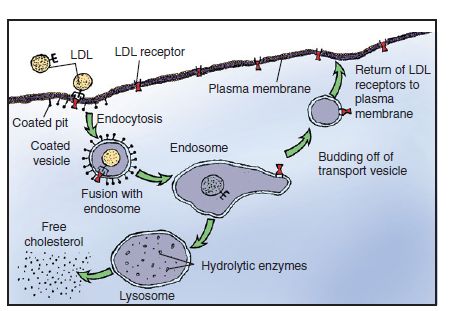 ????️ تصویر ۱.۱۲ کتاب کانینگهام (Fig. 1.12) ( مسیر اندوسیتوز با واسطه گیرنده LDL، بازیافت گیرندهها به غشا و هضم در لیزوزوم )
تصویر ۱.۱۲: فرآیند برداشت کلسترول از طریق ذرات LDL. کمپلکس LDL و گیرنده در Coated pit وارد اندوزوم میشود؛ گیرندهها به غشای پلاسمایی بازمیگردند و ذره LDL پس از ادغام با لیزوزوم هضم شده و کلسترول آزاد تولید میکند.
۱۰. انتقال و تبدیل اطلاعات سلولی: زنجیره علت و معلول «روپ گلدبرگ»
در سطح مولکولی، تقریباً تمامی پیامرسانیهای شیمیایی در سلول (توسط هورمونها، فاکتورهای رشد و انتقالدهندههای عصبی) از یک استراتژی مشترک پیروی میکنند: پیامها به صورت یک زنجیره طولانی از برهمکنشهای علت و معلولی شیمیایی در میان چندین مرحله متوالی منتقل میشوند.
نویسنده کتاب این زنجیرهها را به ماشینهای کارتونی روپ گلدبرگ (Rube Goldberg Device) تشبیه میکند؛ مانند دستگاهی که برای باز کردن خودکار درِ گاراژ طراحی شده بود: ورود خودرو به مسیر باعث میشود چکشی به یک چاشنی ضربه بزند، صدای آن خرگوشی را بترساند، دویدن خرگوش نخ متصل به ماشه یک تپانچه را بکشد، شلیک تپانچه آبپاش را فعال کند و چرخش آبپاش در نهایت درِ گاراژ را باز کند! اهمیت این تشبیه در پزشکی و داروشناسی دامپزشکی عبارت است از:
- نقاط متعدد برای مداخله دارویی: هیچ یک از اجزای زنجیره به تنهایی «کنترلکننده مطلق» نیست، بلکه همه اجزا در کنترل سهیماند؛ بنابراین داروهای مختلف میتوانند در نقاط میانی مسیر مداخله کرده و پاسخ نهایی را تقویت یا مهار کنند.
- قدرت پیشبینی بالینی: به محض یادگیری توالی زنجیره، با دانستن وضعیت یک حلقه از زنجیره میتوانید پیشبینی کنید در مرحله بعد چه اتفاقی میافتد.
- استفاده از اجزای مشترک و حفاظتشده: سلولها از پروتئینهای مشابهی در بسیاری از مسیرهای پیامپاسخ گوناگون استفاده میکنند.
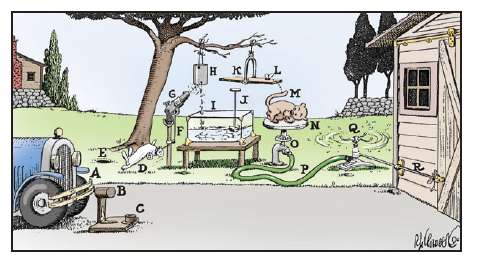 ????️ تصویر ۱.۱۳ کتاب کانینگهام (Fig. 1.13) ( کارتون دستگاه بازکننده خودکار در گاراژ روپ گلدبرگ به عنوان تشبیهی برای آبشار پیامرسانی سلولی )
تصویر ۱.۱۳: دستگاه روپ گلدبرگ (حدود سال ۱۹۲۸) به عنوان تشبیهی برای توالی پیچیده علت و معلولی در پیامرسانی شیمیایی سلولها؛ جایی که هر تغییر کوچک باعث فعال شدن مرحله بعدی تا رسیدن به پاسخ نهایی میشود.
سه خانواده بزرگ گیرندهها و اصل نهفته بودن پیام در کمپلکس گیرنده-لیگاند
مسیرهای پیامرسانی با اتصال پیامرسان خارجی به یک گیرنده (Receptor) آغاز میشوند که به سه خانواده اصلی تقسیم میگردند: (۱) گیرندههای جفتشده با پروتئین G (GPCRs)، (۲) گیرندههای تیروزین کیناز (RTKs) و (۳) گیرندههای هستهای (Nuclear Receptors) که در سیتوپلاسم یا هسته قرار دارند و به هورمونهای چربیدوست (استروئیدی و تیروئیدی) متصل میشوند.
???? بیا سادهش کنیم: هورمون مثل «صدای زنگ تلفن» است، نه خودِ پیام!
چطور ممکن است یک مولکول واحد مثل استیلکولین، عضله اسکلتی را منقبض کند اما ضربان قلب را کم کند؟ چون خودِ هورمون یا انتقالدهنده عصبی حاوی اطلاعات نیست؛ بلکه فقط مثل صدای زنگ تلفن است! این شکل سهبعدی گیرنده (گوشی تلفن) است که تعیین میکند پس از برداشتن گوشی چه پیامی به سلول داده شود (گیرنده نیکوتینیک در عضله اسکلتی کانال یونی را باز میکند، اما گیرنده موسکارینی در قلب یک مسیر GPCR را فعال میکند). همچنین سلول در مواجهه طولانیمدت با غلظت بالای هورمون، با بلعیدن گیرندهها (Downregulation) یا فسفریله کردن آنها (Desensitization) حساسیت خود را کم میکند.
۱۱. ابرخانواده گیرندههای GPCR و کلید روشن-خاموش پروتئین G
گیرندههای جفتشده با پروتئین G (GPCRs) بزرگترین ابرخانواده گیرندهها هستند (حدود ۹۰۰ نوع در انسان و ۱۳۰۰ نوع در جوندگان که حس بویایی بسیار قوی دارند). تخمین زده میشود که ۴۰ تا ۵۰ درصد تمامی داروهای تجاری در مسیر GPCRها عمل میکنند. تمامی GPCRها از یک زنجیره پلیپپتیدی تشکیل شدهاند که هفت بار از غشا رفت و برگشت میکند (گیرندههای مارپیچی یا Seven-transmembrane).
| خانواده گیرنده GPCR | عملکرد فیزیولوژیک شاخص | لیگاندها و داروهای بالینی مرتبط |
|---|---|---|
| آلفا-آدرنرژیک (α-Adrenergic) | تنظیم تون و انقباض عروق خونی | فنیلافرین (Phenylephrine)، اکسیمتازولین |
| بتا-آدرنرژیک (β-Adrenergic) | تنظیم ضربان و نیروی انقباض قلب و گشادشدن برونشها | آتنولول (Atenolol)، پروپرانولول (Propranolol) |
| موسکارینی (Muscarinic) | ترشح غدد گوارشی، هورمونها و انتقالدهندههای عصبی | آتروپین (Atropine)، کارباکول (Carbachol) |
| هیستامینی (Histamine) | واسطه واکنشهای التهابی، آلرژی و ترشح اسید معده | دیفنهیدرامین (Diphenhydramine)، کلرفنیرامین |
| اپیوئیدی (Opioid) | میانجیگری بیدردی (Analgesia) و مهار درد | مرفین (Morphine)، کدئین (Codeine) |
| وازوپرسین (Vasopressin / ADH) | تنظیم تعادل آب بدن و بازجذب آب در کلیه | دسموپرسین (Desmopressin)، ترلیپرسین |
| آنژیوتانسین (Angiotensin) | تنظیمکننده اصلی فشار خون سیستمیک | لوزارتان (Losartan) |
| دوپامین / سروتونین | حرکت، شناخت، اشتها و حرکات دستگاه گوارش | کلرپرومازین، بروموکریپتین، سوماتریپتان |
چرخه کار پروتئین G هتروتریمریک (کلید روشن-خاموش مولکولی)
- وضعیت خاموش (Off State): در غیاب لیگاند، زیرواحد Gα به مولکول GDP متصل است و به زیرواحدهای Gβγ چسبیده است.
- روشن شدن (Activation): با اتصال هورمون به GPCR، گیرنده تغییر شکل داده و پروتئین G را فعال میکند؛ زیرواحد Gβγ جدا میشود و Gα مولکول GDP را با GTP تعویض میکند. زیرواحد Gα-GTP روشن شده و آنزیمها یا کانالهای یونی غشا را فعال یا مهار میکند (کمپلکس Gβγ نیز میتواند برخی کانالهای K⁺ را باز و کانالهای Ca²⁺ ولتاژی را مهار کند).
- خاموش شدن خودکار (Intrinsic GTPase): زیرواحد Gα دارای فعالیت آنزیمی ذاتی GTPase است که GTP را دوباره به GDP هیدرولیز میکند؛ در نتیجه به Gβγ پیوسته و به حالت استراحت برمیگردد. (پروتئینهای G کوچک و تکواحدی مانند Rab در ادغام وزیکولها و Ras در تقسیم سلولی و سرطان نیز از همین کلید GTP/GDP استفاده میکنند).
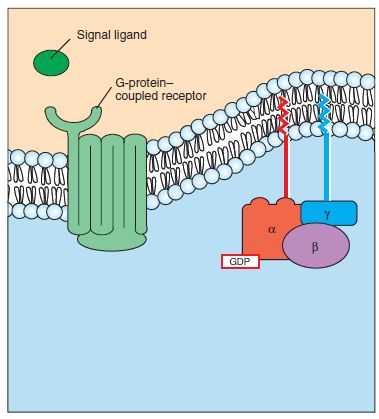 ????️ تصویر ۱.۱۴ کتاب کانینگهام (Fig. 1.14) ( ساختار گیرنده هفتگذرغشایی GPCR و پروتئین G سهزیرواحدی متصل به GDP )
تصویر ۱.۱۴: گیرنده جفتشده با پروتئین G (GPCR) که هفت بار در عرض غشای دولایه پیچ و تاب میخورد و پروتئین G هتروتریمریک (متشکل از زیرواحدهای α، β و γ متصل به غشا از طریق دمهای لیپیدی).
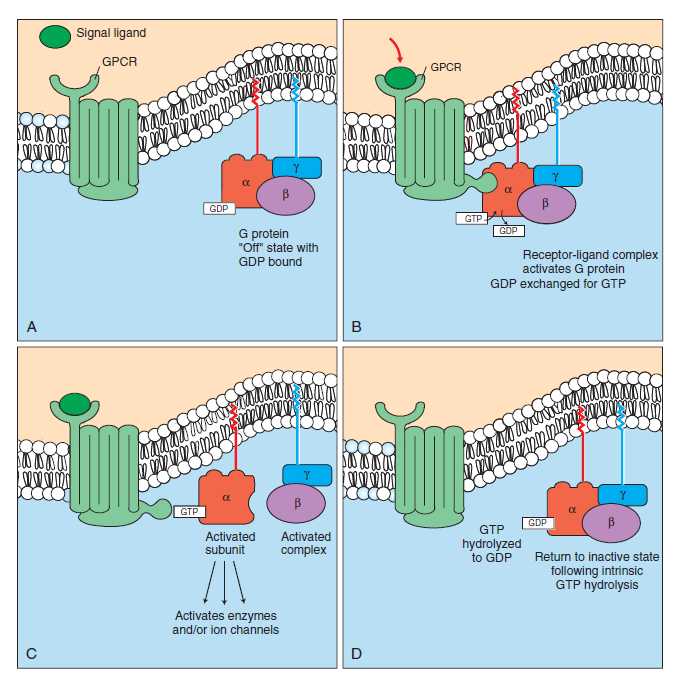 ????️ تصویر ۱.۱۵ کتاب کانینگهام (Fig. 1.15) ( چرخه چهارمرحلهای روشن و خاموش شدن پروتئین G: A حالت خاموش، B تعویض GDP با GTP، C فعالسازی، D هیدرولیز GTP )
تصویر ۱.۱۵: چرخه کاری پروتئین G هتروتریمریک به عنوان یک کلید روشن-خاموش مولکولی. اتصال لیگاند باعث تعویض GDP با GTP در زیرواحد α و فعال شدن آن میشود تا زمانی که فعالیت ذاتی GTPase آن را دوباره خاموش کند.
۱۲. پیکهای ثانویه (Second Messengers): کلسیم، cAMP و مسیر IP₃/DAG
پروتئینهای G فعالشده پیام خارجی (پیک اول) را از طریق تولید یا آزادسازی مولکولهای کوچکی به نام پیکهای ثانویه (Second messengers) به درون سیتوپلاسم منتقل میکنند:
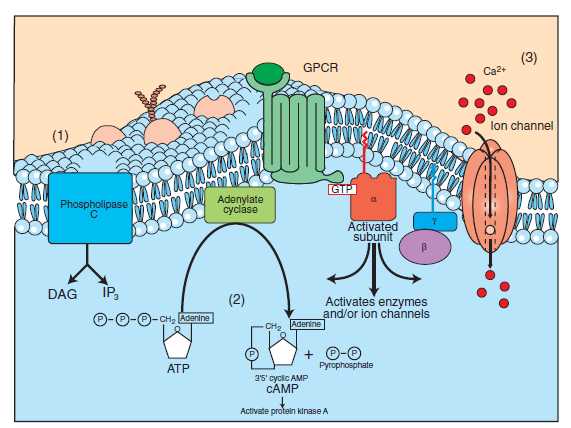 ????️ تصویر ۱.۱۶ کتاب کانینگهام (Fig. 1.16) ( نمای کلی سه سیستم پیک ثانویه ناشی از فعال شدن زیرواحد Gα: مسیر IP3/DAG، مسیر cAMP و کانالهای Ca2+ )
تصویر ۱.۱۶: سه مسیر اصلی پیکهای ثانویه در سیتوپلاسم: (۱) تجزیه PIP₂ توسط فسفولیپاز C به DAG و IP₃، (۲) تولید cAMP از ATP توسط آدنیلیل سیکلاز، و (۳) ورود یون Ca²⁺ از طریق کانالهای دریچهدار.
الف) یون کلسیم (Ca²⁺) و تنظیم انقباض عضله صاف با کالمودولین
غلظت کلسیم در سیتوپلاسم سلول در حال استراحت بسیار پایین (10⁻⁷ mol/L) و در خارج سلول و شبکه آندوپلاسمی ۱۰,۰۰۰ برابر (10⁴) بیشتر است؛ بنابراین کوچکترین بازشدن کانال کلسیمی موج سریعی از Ca²⁺ را وارد سیتوپلاسم میکند. در عضلات صاف (برخلاف عضلات مخطط که تروپونین دارند)، کلسیم به پروتئین کالمودولین (Calmodulin) متصل میشود. کمپلکس Ca²⁺/Calmodulin آنزیم میوزین کیناز را فعال کرده و سرهای میوزین را فسفریله میکند تا امکان اتصال به اکتین و انقباض عضله صاف فراهم شود. توقف انقباض نیز با برداشتن فسفات توسط آنزیم میوزین فسفاتاز رخ میدهد.
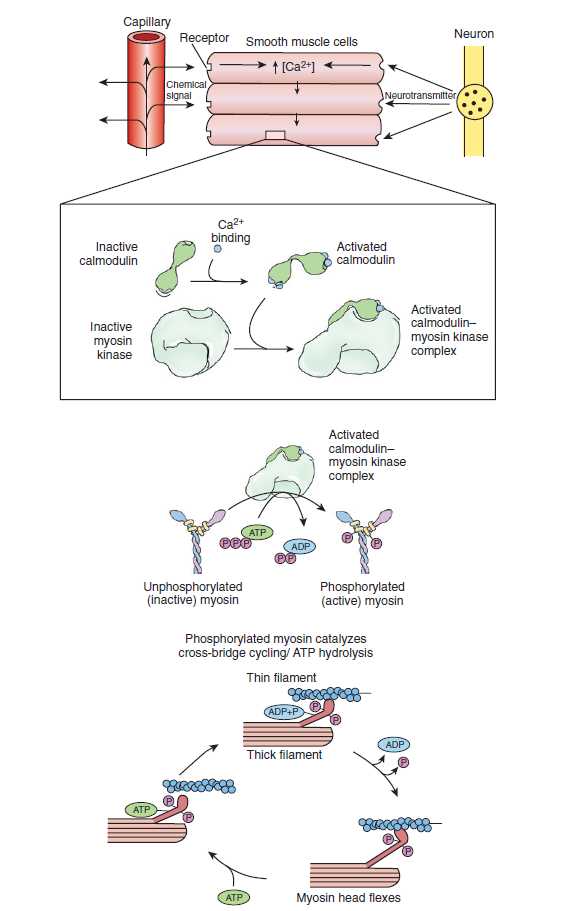 ????️ تصویر ۱.۱۷ کتاب کانینگهام (Fig. 1.17) ( مکانیسم انقباض عضله صاف از طریق کمپلکس کلسیم-کالمودولین و فسفریلاسیون میوزین )
تصویر ۱.۱۷: نقش کلسیم و کالمودولین در تنظیم انقباض عضله صاف (کنترل بر روی فیلامان ضخیم میوزین از طریق فسفریلاسیون، برخلاف کنترل عضله مخطط که بر روی فیلامان نازک بود).
ب) سیستم آدنوزین مونووفسفات حلقوی (cAMP) و پروتئین کیناز A (PKA)
زیرواحد تحریکی Gs آنزیم آدنیلیل سیکلاز را فعال کرده و ATP را به cAMP تبدیل میکند، در حالی که زیرواحد مهاری Gi (فعالشده توسط گیرندههای اپیوئیدی یا α₂-آدرنرژیک) آن را مهار مینماید. سم باکتری وبا Gs را به طور دائم فعال نگه میدارد و سم سیاهسرفه Gi را قفل میکند. آنزیم فسفودیاستراز (PDE) نیز با تبدیل cAMP به 5'-AMP غیرفعال، پیام را خاتمه میدهد. افزایش cAMP باعث فعال شدن پروتئین کیناز A (PKA) میشود؛ برای مثال در استرس، اتصال اپینفرین به گیرندههای β-آدرنرژیک قلب از طریق cAMP و PKA کانالهای کلسیمی غشای قلب را فسفریله کرده و نیروی انقباض قلب را افزایش میدهد. (مولکول مشابه cGMP نیز در بینایی و اتساع عروق اجسام غاری نقش دارد و داروی سیلدنافیل با مهار PDE مانع تجزیه آن میشود).
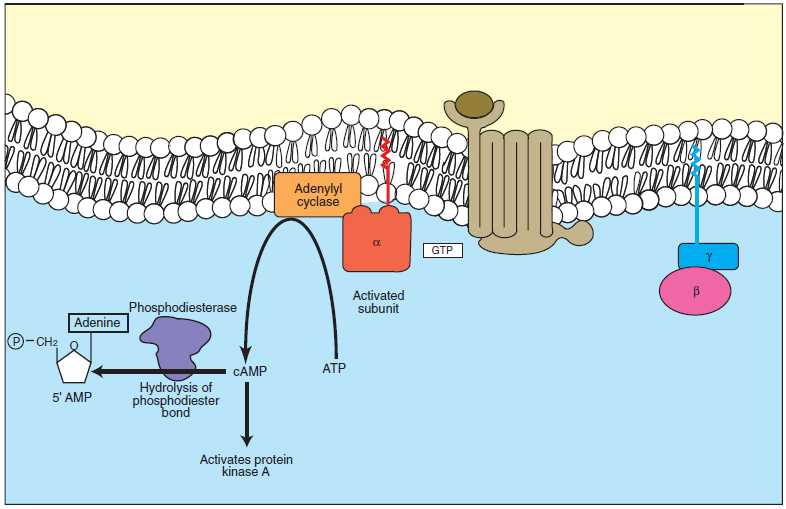 ????️ تصویر ۱.۱۸ کتاب کانینگهام (Fig. 1.18) ( تولید cAMP توسط آدنیلیل سیکلاز، فعالسازی PKA و غیرفعالسازی آن توسط فسفودیاستراز )
تصویر ۱.۱۸: فعالیت cAMP به عنوان پیک ثانویه. فعالسازی آدنیلیل سیکلاز توسط Gs موجب تولید cAMP و فعالسازی پروتئین کیناز A میشود و آنزیم فسفودیاستراز آن را به 5'-AMP تجزیه میکند.
ج) مسیر فسفولیپاز C و تولید همزمان دو پیک ثانویه IP₃ و DAG
فعال شدن آنزیم غشایی فسفولیپاز C (PLC) موجب هیدرولیز فسفولیپید غشایی PIP₂ به دو پیک ثانویه متفاوت میشود: (۱) اینوزیتول ۱، ۴، ۵-تریفسفات (IP₃) که محلول در آب است، وارد سیتوپلاسم شده و با باز کردن کانالهای کلسیمی شبکه آندوپلاسمی، Ca²⁺ را آزاد میکند (مثلاً برای تحریک ترشح آنزیمهای پانکراس)؛ و (۲) دیآسیلگلیسرول (DAG) که چربیدوست است و درون غشا مانده تا پروتئین کیناز C (PKC) و در بلندمدت عامل رونویسی NF-κB را فعال نماید.
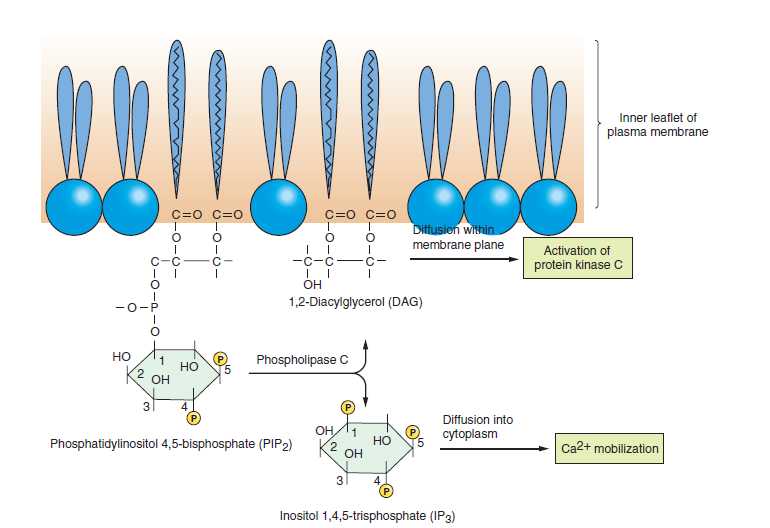 ????️ تصویر ۱.۱۹ کتاب کانینگهام (Fig. 1.19) ( هیدرولیز PIP2 توسط فسفولیپاز C به DAG در غشا و IP3 در سیتوپلاسم )
تصویر ۱.۱۹: تجزیه فسفولیپید غشایی PIP₂ به دو پیک ثانویه: IP₃ محلول در آب که باعث آزادسازی کلسیم از شبکه آندوپلاسمی میشود و DAG چربیدوست که پروتئین کیناز C را در غشا فعال میکند.
۱۳. گیرندههای هستهای و تنظیم مستقیم بیان ژن توسط هورمونهای استروئیدی
هورمونهای استروئیدی و تیروئیدی به دلیل ماهیت چربیدوست به راحتی از غشا عبور کرده و به گیرندههای هستهای (دارای دومینهای اتصال به DNA به نام انگشتان روی / Zinc fingers) متصل میشوند. برای مثال در مرغهای تخمگذار، استروژن وارد سلولهای اپیتلیال مجرای تخمبر شده و به گیرنده استروژن متصل میشود؛ با جدا شدن کمپلکس پروتئینی مهاری، جایگاه اتصال به DNA آشکار شده و کمپلکس هورمون-گیرنده وارد هسته میگردد تا با اتصال به عنصر پاسخ به استروژن، رونویسی ژن اوالبومین (پروتئین اصلی سفیده تخممرغ) را فعال کند.
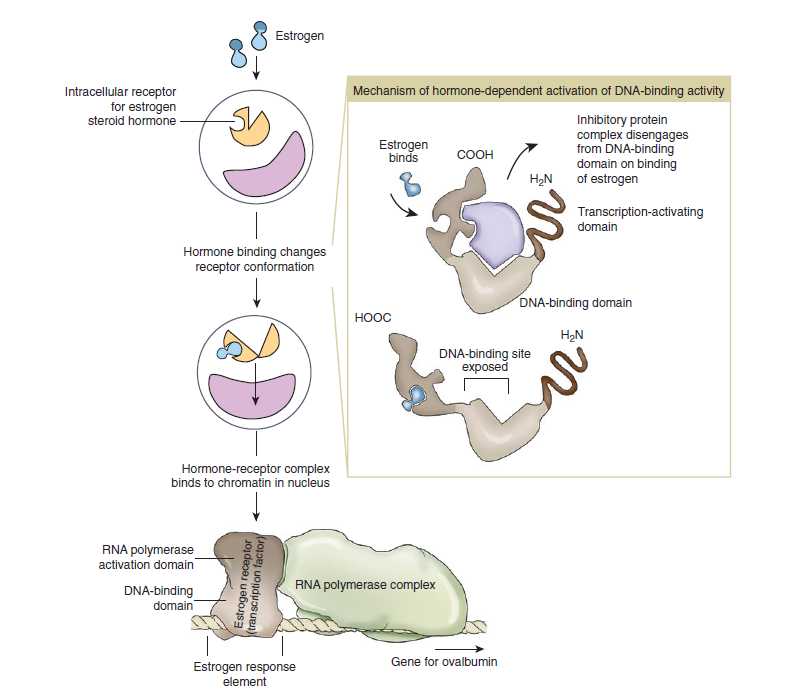 ????️ تصویر ۱.۲۰ کتاب کانینگهام (Fig. 1.20) ( مکانیسم اثر استروژن بر گیرنده درونسلولی، ورود به هسته و فعالسازی ژن اوالبومین در مرغ )
تصویر ۱.۲۰: نحوه عمل هورمونهای استروئیدی در تنظیم بیان ژن اوالبومین توسط استروژن در سلولهای مجرای تخمبر مرغ.
۱۴. ارتباطات بالینی (Clinical Correlations): کاربرد علوم پایه در نجات جان بیماران
در پایان فصل اول، کتاب کانینگهام با ارائه دو کیس واقعی و بسیار پرتکرار در آزمونهای بورد، نشان میدهد که تسلط بر قوانین غشا، اسمز و کانالهای یونی چگونه مستقیماً به تشخیص و درمان نجاتبخش در دامپزشکی منجر میشود:
???? ادم محیطی در گاو مبتلا به بیماری جسم خارجی (Peripheral Edema / Hardware Disease)
???? مادیان کوارتر هورس مبتلا به فلج دورهای هایپرکالمیک (HYPP)
• موارد خفیف اولیه: خوراندن شربت ذرت (Corn syrup) برای تحریک ترشح انسولین؛ انسولین فعالیت پمپ سدیم-پتاسیم (Na⁺/K⁺-ATPase) را تحریک کرده و پتاسیم اضافه را به داخل سلول میکشد.
• موارد شدیدتر: تزریق وریدی گلوکونات کلسیم (بالا بردن آستانه تحریک غشای عضلانی) و دکستروز وریدی (تولید ATP و فعالسازی پمپ سدیم-پتاسیم).
• کنترل بلندمدت: کاهش پتاسیم جیره، کاهش استرس و تجویز استازولامید (Acetazolamide) جهت افزایش دفع کلیوی پتاسیم و تحریک ترشح انسولین.
???? بیا سادهش کنیم: چرا در اسب HYPP با وجود «هایپرکالمی» (تحریک اولیه)، اسب «فلج» میشود؟
کانال سدیمی مثل یک درِ خودکار دو مرحلهای است: در اول باز میشود تا سدیم وارد شود (دپولاریزاسیون و لرزش عضله)، و بلافاصله در دوم (دریچه غیرفعالسازی) میبندد تا سلول استراحت کند و برای پیام بعدی آماده شود. در اسبهای مبتلا به HYPP، درِ دوم خراب است و بسته نمیشود! پس غشا در حالت «روشنِ دائم» قفل میماند و دیگر نمیتواند پیام عصبی جدیدی بگیرد؛ درست مثل دکمه زنگ دری که گیر کرده و دیگر صدای زنگ جدیدی تولید نمیکند! ما هم با دادن شربت ذرت و انسولین، پمپ سدیم-پتاسیم را روشن میکنیم تا پتاسیمهای مزاحم را به داخل سلول جارو کند!
❓ سؤالات خودآزمایی انتهای فصل اول کانینگهام (Practice Questions)
- الف) هیچ تأثیری بر پتانسیل استراحت غشا ندارد.
- ب) موجب کاهش پتانسیل استراحت غشا میشود (یعنی داخل سلول نسبت به خارج کمتر منفی میشود / دپولاریزاسیون).
- ج) موجب افزایش پتانسیل استراحت غشا میشود (داخل سلول منفیتر میشود).
- د) پتانسیل غلظتی پتاسیم در عرض غشا را افزایش میدهد.
- هـ) پمپ سدیم-پتاسیم را مجبور میکند برای پمپ کردن پتاسیم سختتر کار کند.
- الف) به مولکولهای پیامرسان خارجسلولی متصل میشوند.
- ب) مستقیماً با زیرواحدهای کاتالیزوری آدنیلیل سیکلاز برهمکنش دارند.
- ج) دارای وضعیتهای فعال و غیرفعال هستند که به اتصال لیگاند وابسته است.
- د) مولکولهای پروتئینی خارجسلولی هستند.
- هـ) مستقیماً فعالیت یک پروتئین کیناز را فعال میکنند.


